配列から構造式へ:ペプチドとDNAのSMILES、分子式、質量(無料ツール付き)
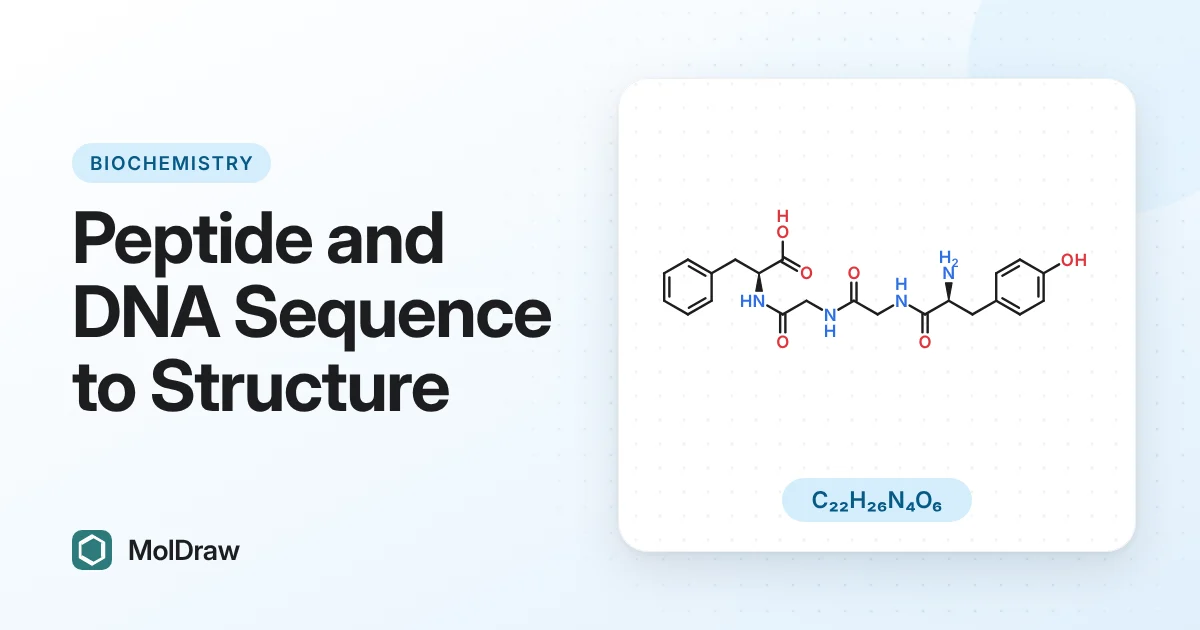
要点:ペプチドの構造は、アミノ酸がペプチド結合でつながったもので、N末端からC末端へ書きます。DNAやRNAの構造は、ヌクレオチドが3′-5′ホスホジエステル結合でつながったもので、5′から3′へ書きます。ペプチド・DNA配列から構造へツールに配列を貼り付けると、完全な異性体SMILES、構造式、分子式、質量が得られます。GGGはC6H11N3O4(189.0750 Da)、5′-ATGC-3′はC39H50N15O22P3(1173.82 g/mol)です。
重要用語を1行ずつ
| ペプチド結合 | あるアミノ酸のカルボキシ炭素と次のアミノ酸のアミノ窒素の間のアミドC(=O)–NH結合。 |
|---|---|
| 残基 | 鎖の中のアミノ酸:遊離アミノ酸からH2Oを1分子引いたもの。 |
| N末端、C末端 | 遊離のアミノ基側の末端と遊離のカルボキシ基側の末端。配列はNからCへ書きます。 |
| ヌクレオチド | 糖の1′位の炭素に塩基が付き、リン酸を持つもの。DNAは2-デオキシリボース、RNAはリボースを使います。 |
| ホスホジエステル結合 | ある糖の3′-酸素から次の糖の5′-酸素へのO–P–O結合。 |
| モノアイソトピック質量 | 各元素の最も存在比の高い同位体を使った質量。高分解能MSの最初のピークに一致します。 |
| 平均質量 | 天然の同位体存在比を使った質量。秤量やモル濃度に使います。 |
ペプチド配列から構造式へ
ペプチド結合1つごとに水が1分子放出されます。したがって直鎖ペプチドの分子式は、残基の分子式の合計に、2つの遊離末端の分としてH2Oを1つ足したものです。
計算例、GGG:グリシンはC2H5NO2です。グリシン3分子でC6H15N3O6。ペプチド結合2つで2 H2Oが除かれます。結果:C6H11N3O4、モノアイソトピック質量189.0750 Da。
順序は重要です。Asp-Phe(DF)はアスパラギン酸側に遊離のNH2を持ち、Phe-Asp(FD)はフェニルアラニン側に持ちます。分子式は同じでも異なる分子です。
α炭素はすべてL体です。CIP則では、標準残基はすべてSですが、システインだけは硫黄がカルボキシ基より優先順位が高いのでRです。グリシンには不斉中心がありません。イソロイシンは(2S,3S)、トレオニンは(2S,3R)です。
末端基は分子式を変えます。
- N末端アセチル化:+ C2H2O、+42.0106 Da。
- C末端アミド:−OHが−NH2になり、−0.9840 Da。
- 頭尾環状化:ペプチド結合が1つ増え、−H2O、−18.0106 Da。
- ジスルフィド結合:S–S結合1つにつき−2 H、−2.0157 Da。
pI、電荷、モル吸光係数
ペプチドの正味の電荷は、すべてのイオン化可能な基の合計です。塩基性基は+1 / (1 + 10pH − pKa)を、酸性基は−1 / (1 + 10pKa − pH)を加えます。等電点(pI)は正味の電荷がゼロになるpHです。
ツールはEMBOSSのpKaセットを使います:N末端8.6、C末端3.6、Asp 3.9、Glu 4.1、His 6.5、Cys 8.5、Tyr 10.1、Lys 10.8、Arg 12.5。GGGでは両末端しか基がないので、pI = (3.6 + 8.6) / 2 = 6.10です。
280 nmのモル吸光係数は、Trp、Tyr、シスチンから求めます:ε280 = 5500 × n(Trp) + 1490 × n(Tyr) + 125 × n(cystine) M−1 cm−1(Paceら、1995)。Trp、Tyr、Cysを含まないペプチドは280 nmで吸収しません。
DNA・RNA配列から構造式へ
各ヌクレオチドは糖の1′位の炭素に塩基を持ちます。アデニンとグアニンはN9で、シトシン、チミン、ウラシルはN1で結合します。糖はすべてβ-D体です。リン酸があるヌクレオチドの3′-酸素と次のヌクレオチドの5′-酸素をつなぐので、どの鎖にも5′末端と3′末端があります。
計算例、5′-ATGC-3′:4つのデオキシヌクレオシドはdA C10H13N5O3、dT C10H14N2O5、dG C10H13N5O4、dC C9H13N3O4で、合計C39H53N15O16です。3つのホスホジエステル結合はそれぞれH3PO4を加えて2 H2Oを除くので、正味でPO2からHを1つ引いた分になります。結果:C39H50N15O22P3、1173.82 g/mol。5′-リン酸はHPO3(+79.9663 Da)を加えます。
RNAは各リボースに2′-OHを持ち、ヌクレオチドごとに酸素が1つ多く、TではなくUを使います。
- GC含量:(G + C) / N × 100 %。
- 相補鎖:AはT(RNAではU)と、GはCと対をなし、3′から5′へ読みます。
- 逆相補鎖:相補鎖を5′から3′へ書いたもの。
- Tm、Wallaceの式(14 nt未満):2 × (A + T) + 4 × (G + C) °C。
- Tm、基本的なGC式(14 nt以上):64.9 + 41 × (G + C − 16.4) / N °C。
MolDrawの配列→構造式ツールの使い方
- ペプチド・DNA配列から構造へのページを開き、PeptideまたはDNA or RNAを選びます。
- 配列を入力するか貼り付けます。空白、数字、ハイフン、FASTAのヘッダー行は無視されます。Input formatが1文字表記か3文字表記かを自動で判別します。
- ペプチドでは、必要に応じてN-terminal acetyl (Ac-)、C-terminal amide (-NH₂)、Head-to-tail cyclic、Disulfide bonds (Cys 1–2, 3–4…)にチェックを入れます。DNAやRNAでは、5′末端がリン酸化されていれば5′-phosphateにチェックを入れます。
- Build structureを押します。結果は入力に合わせて更新されます。
- Copy SMILES、Download MOL、Download SDF、Open in MolDraw editorを使います。構造式が描かれるのは30残基(ヌクレオチド)までです。それより長い配列(最大2000)でも、分子式、質量、SMILESは得られます。
例題
例1:質量分析のためのアンジオテンシンII
DRVYIHPFからはC50H71N13O12が得られます。モノアイソトピック質量1045.5345 Da、[M+H]+ 1046.5418、[M+2H]2+ 523.7745。pI 7.54、pH 7での電荷+0.22。Tyrが1つあるのでε280 = 1490 M−1 cm−1です。
例2:ジスルフィド結合とアミドを持つオキシトシン
CYIQNPCLGと入力し、C-terminal amideとDisulfide bondsにチェックを入れます。Cys1とCys6が結合し、20員環が閉じます。結果:C43H66N12O12S2、1007.19 g/mol、モノアイソトピック質量1006.4365 Da。
例3:M13フォワードシーケンシングプライマー
5′-GTAAAACGACGGCCAGT-3′は17 ntでGまたはCが9個なので、GC = 52.9 %です。14 nt以上なので基本的なGC式を使います:Tm = 64.9 + 41 × (9 − 16.4) / 17 = 47.1 °C。逆相補鎖は5′-ACTGGCCGTCGTTTTAC-3′です。
例4:EcoRI部位
5′-GAATTC-3′は、制限酵素部位によくあるように、それ自体が逆相補鎖です。GC = 33.3 %、WallaceのTm = 2 × 4 + 4 × 2 = 16 °C。遊離末端を持つ一本鎖としてはC59H75N22O34P5、1791.22 g/molです。
まとめの表
| GGG | C6H11N3O4、189.0750 Da、pI 6.10 |
|---|---|
| Asp-Phe(DF) | C13H16N2O5、280.1059 Da、pI 3.75 |
| アンジオテンシンII | C50H71N13O12、1045.5345 Da、pI 7.54 |
| オキシトシン | C43H66N12O12S2, 1007.19 g/mol |
| DNA ATGC | C39H50N15O22P3、1173.82 g/mol、GC 50 %、Tm 12 °C |
| M13フォワードプライマー | 17 nt、GC 52.9 %、Tm 47.1 °C |
よくある間違い
- ペプチドを逆の端から書く。YGGFLはLeu-エンケファリンです。LFGGYは別のペプチドです。
- 残基ごとに水を足す。直鎖では全体でH2Oを1つ足すだけで、残基ごとではありません。環状ペプチドでは足しません。
- MSのピークに平均質量を使う。高分解能のピークはモノアイソトピック質量に一致します。
- ジスルフィド結合を忘れる。S–S結合1つにつき−2.016 Daです。
- TとUを混同する。TはDNA、UはRNAです。
- プライマーを単なる相補鎖で注文する。オリゴは5′から3′へ合成されるので、通常は逆相補鎖が必要です。
- 長いプライマーにWallaceの式を使う。約14 ntを超えるとTmを過大評価します。
質問と回答
ペプチド配列を化学構造式にするには?
N末端からC末端へ、アミノ酸をペプチド結合でつなぎます。結合1つにつき水が1分子失われます。MolDrawのツールならこれを自動で行います。DRVYIHPFやAsp-Arg-Val-Tyr-Ile-His-Pro-Pheと入力すると、異性体SMILES、構造式、分子式、質量が得られます。
GGGの分子式と質量は?
トリグリシン(GGG)はC6H11N3O4です。モノアイソトピック質量は189.0750 Da、平均モル質量は189.17 g/molです。
アンジオテンシンIIの精密質量は?
アンジオテンシンII(DRVYIHPF)はC50H71N13O12です。モノアイソトピック質量は1045.5345 Da、[M+H]+イオンはm/z 1046.5418、平均質量は1046.18 g/molです。
DNA配列を5'→3'の向きに書くのはなぜですか?
各ヌクレオチドは、ある糖の3'-酸素から次の糖の5'-炭素側へ、リン酸を介してつながっています。そのため鎖には5'末端と3'末端があり、慣例として5'末端から書き始めます。
プライマーのTmはどう計算しますか?
14ヌクレオチド未満ならWallaceの式、Tm = 2(A+T) + 4(G+C)(°C)を使います。14以上ならTm = 64.9 + 41(G+C − 16.4)/Nを使います。M13フォワードプライマーGTAAAACGACGGCCAGT(17 nt、GまたはCが9個)では47.1 °Cになります。
DNA配列の逆相補鎖とは何ですか?
各塩基を相手の塩基(AとT、GとC)に置き換え、順序を逆にして5'→3'で読めるようにしたものです。5'-ATGC-3'の逆相補鎖は5'-GCAT-3'です。EcoRI部位のGAATTCは、それ自体が逆相補鎖になっています。
ペプチドのpIにはどのpKa値を使いますか?
EMBOSSのセットです:N末端8.6、C末端3.6、Asp 3.9、Glu 4.1、His 6.5、Cys 8.5、Tyr 10.1、Lys 10.8、Arg 12.5。他のpKaセットでは、pIが0.数単位ずれることがあります。
ジスルフィド結合はペプチドの質量を変えますか?
はい。S–S結合1つにつき水素原子が2個失われるので、モノアイソトピック質量は2.0157 Da減ります。ジスルフィド結合1つとC末端アミドを持つオキシトシンはC43H66N12O12S2、1007.19 g/molです。