Dalla sequenza alla struttura: SMILES, formula e massa di peptidi e DNA, con uno strumento gratuito
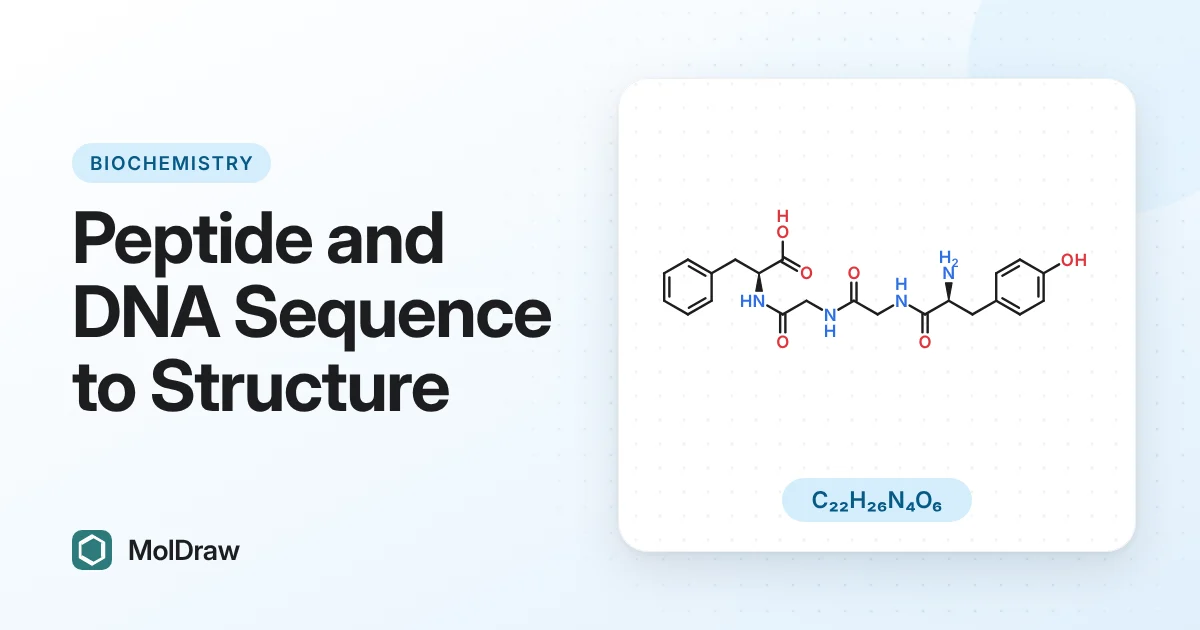
Risposta breve: la struttura di un peptide è formata dai suoi amminoacidi uniti da legami peptidici, scritti dall'N-terminale al C-terminale. La struttura di un DNA o di un RNA è formata dai suoi nucleotidi uniti da legami fosfodiestere 3′-5′, scritti da 5′ a 3′. Incolla una sequenza nello strumento da sequenza peptidica e di DNA a struttura per ottenere lo SMILES isomerico completo, un disegno, la formula e le masse. GGG è C6H11N3O4 (189,0750 Da) e 5′-ATGC-3′ è C39H50N15O22P3 (1173,82 g/mol).
Termini chiave in una riga ciascuno
| Legame peptidico | Il legame ammidico C(=O)–NH tra il carbonio carbossilico di un amminoacido e l'azoto amminico del successivo. |
|---|---|
| Residuo | Un amminoacido all'interno di una catena: l'amminoacido libero meno una H2O. |
| N-terminale, C-terminale | L'estremità amminica libera e l'estremità carbossilica libera. Le sequenze si scrivono da N a C. |
| Nucleotide | Una base sul carbonio 1′ di uno zucchero, con un fosfato. Il DNA usa il 2-desossiribosio, l'RNA il ribosio. |
| Legame fosfodiestere | Il legame O–P–O dall'ossigeno in 3′ di uno zucchero all'ossigeno in 5′ del successivo. |
| Massa monoisotopica | Massa calcolata con l'isotopo più abbondante di ogni elemento. Corrisponde al primo picco nella MS ad alta risoluzione. |
| Massa media | Massa calcolata con le abbondanze isotopiche naturali. Usala per pesate e molarità. |
Dalla sequenza peptidica alla struttura
Ogni legame peptidico libera una molecola d'acqua. Quindi la formula di un peptide lineare è la somma delle formule dei residui più una H2O per le due estremità libere.
Conto svolto, GGG: la glicina è C2H5NO2. Tre glicine danno C6H15N3O6. Due legami peptidici tolgono 2 H2O. Risultato: C6H11N3O4, 189,0750 Da monoisotopica.
L'ordine conta. Asp-Phe (DF) ha l'NH2 libero sull'acido aspartico, mentre Phe-Asp (FD) lo ha sulla fenilalanina. Sono molecole diverse con la stessa formula.
Ogni carbonio alfa è L. Secondo le regole CIP è S per tutti i residui standard tranne la cisteina, che è R perché lo zolfo ha priorità sul gruppo carbossilico. La glicina non ha stereocentri. L'isoleucina è (2S,3S) e la treonina (2S,3R).
I gruppi terminali cambiano la formula:
- Acetile N-terminale: + C2H2O, +42,0106 Da.
- Ammide C-terminale: −OH diventa −NH2, −0,9840 Da.
- Ciclico testa-coda: un legame peptidico in più, −H2O, −18,0106 Da.
- Ponte disolfuro: −2 H per ogni legame S–S, −2,0157 Da.
pI, carica e coefficiente di estinzione
La carica netta di un peptide è la somma su tutti i gruppi ionizzabili. Un gruppo basico aggiunge +1 / (1 + 10pH − pKa). Un gruppo acido aggiunge −1 / (1 + 10pKa − pH). Il punto isoelettrico (pI) è il pH a cui la carica netta è zero.
Lo strumento usa il set di pKa EMBOSS: N-terminale 8,6, C-terminale 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8, Arg 12,5. Per GGG gli unici gruppi sono le due estremità, quindi pI = (3,6 + 8,6) / 2 = 6,10.
Il coefficiente di estinzione molare a 280 nm deriva da Trp, Tyr e cistine: ε280 = 5500 × n(Trp) + 1490 × n(Tyr) + 125 × n(cistina) M−1 cm−1 (Pace et al., 1995). Un peptide senza Trp, Tyr o Cys non assorbe a 280 nm.
Dalla sequenza di DNA o RNA alla struttura
Ogni nucleotide ha una base sul carbonio 1′ dello zucchero: adenina e guanina tramite N9, citosina, timina e uracile tramite N1. Tutti gli zuccheri sono β-D. Un fosfato unisce l'ossigeno in 3′ di un nucleotide all'ossigeno in 5′ del successivo, quindi ogni filamento ha un'estremità 5′ e un'estremità 3′.
Conto svolto, 5′-ATGC-3′: i quattro desossinucleosidi sono dA C10H13N5O3, dT C10H14N2O5, dG C10H13N5O4 e dC C9H13N3O4, in totale C39H53N15O16. Ciascuno dei 3 legami fosfodiestere aggiunge H3PO4 e toglie 2 H2O, cioè netto PO2 meno un H. Risultato: C39H50N15O22P3, 1173,82 g/mol. Un 5′-fosfato aggiunge HPO3 (+79,9663 Da).
L'RNA ha un 2′-OH su ogni ribosio, un ossigeno in più per nucleotide, e U al posto di T.
- Contenuto in GC: (G + C) / N × 100 %.
- Complementare: A si appaia con T (U nell'RNA), G con C, letto da 3′ a 5′.
- Complementare inverso: il complementare scritto da 5′ a 3′.
- Tm, regola di Wallace (meno di 14 nt): 2 × (A + T) + 4 × (G + C) °C.
- Tm, formula base del GC (14 nt o più): 64,9 + 41 × (G + C − 16,4) / N °C.
Come usare lo strumento MolDraw da sequenza a struttura
- Apri la pagina da sequenza peptidica e di DNA a struttura e scegli Peptide o DNA o RNA.
- Scrivi o incolla la sequenza. Spazi, numeri, trattini e righe di intestazione FASTA vengono ignorati. Formato di input riconosce da solo il codice a una o a tre lettere.
- Per i peptidi, spunta Acetile N-terminale (Ac-), Ammide C-terminale (-NH₂), Ciclico testa-coda o Ponti disolfuro (Cys 1–2, 3–4…) secondo necessità. Per DNA o RNA, spunta 5′-fosfato se l'estremità 5′ è fosforilata.
- Premi Costruisci struttura. I risultati si aggiornano mentre scrivi.
- Usa Copia SMILES, Scarica MOL, Scarica SDF o Apri nell'editor MolDraw. Vengono disegnati fino a 30 residui o nucleotidi. Le sequenze più lunghe, fino a 2000, danno comunque formula, masse e SMILES.
Esempi svolti
Esempio 1: angiotensina II per la spettrometria di massa
DRVYIHPF dà C50H71N13O12. Massa monoisotopica 1045,5345 Da, [M+H]+ 1046,5418, [M+2H]2+ 523,7745. pI 7,54, carica +0,22 a pH 7. Una Tyr dà ε280 = 1490 M−1 cm−1.
Esempio 2: ossitocina con un ponte disolfuro e un'ammide
Scrivi CYIQNPCLG e spunta Ammide C-terminale e Ponti disolfuro. Cys1 e Cys6 vengono unite, chiudendo un anello a 20 termini. Risultato: C43H66N12O12S2, 1007,19 g/mol, monoisotopica 1006,4365 Da.
Esempio 3: il primer di sequenziamento forward M13
5′-GTAAAACGACGGCCAGT-3′ ha 17 nt con 9 G o C, quindi GC = 52,9 %. Con 14 nt o più si applica la formula base del GC: Tm = 64,9 + 41 × (9 − 16,4) / 17 = 47,1 °C. Il complementare inverso è 5′-ACTGGCCGTCGTTTTAC-3′.
Esempio 4: il sito di EcoRI
5′-GAATTC-3′ è il complementare inverso di sé stesso, come di solito i siti di restrizione. GC = 33,3 %, Tm di Wallace = 2 × 4 + 4 × 2 = 16 °C. Come singolo filamento con estremità libere è C59H75N22O34P5, 1791,22 g/mol.
Tabella riassuntiva
| GGG | C6H11N3O4, 189,0750 Da, pI 6,10 |
|---|---|
| Asp-Phe (DF) | C13H16N2O5, 280,1059 Da, pI 3,75 |
| Angiotensina II | C50H71N13O12, 1045,5345 Da, pI 7,54 |
| Ossitocina | C43H66N12O12S2, 1007,19 g/mol |
| DNA ATGC | C39H50N15O22P3, 1173,82 g/mol, GC 50 %, Tm 12 °C |
| Primer forward M13 | 17 nt, GC 52,9 %, Tm 47,1 °C |
Errori comuni
- Scrivere un peptide dall'estremità sbagliata. YGGFL è la Leu-encefalina. LFGGY è un peptide diverso.
- Aggiungere una molecola d'acqua per residuo. Una catena lineare riceve in totale una sola H2O, non una per residuo. Un peptide ciclico non ne riceve nessuna.
- Usare la massa media per i picchi MS. I picchi ad alta risoluzione corrispondono alla massa monoisotopica.
- Dimenticare i ponti disolfuro. Ogni legame S–S vale −2,016 Da.
- Confondere T e U. T è del DNA, U dell'RNA.
- Ordinare un primer come semplice complementare. Gli oligonucleotidi si sintetizzano da 5′ a 3′, quindi di solito serve il complementare inverso.
- Usare la regola di Wallace per primer lunghi. Sovrastima la Tm oltre circa 14 nt.
Domande e risposte
Come trasformo una sequenza peptidica in una struttura chimica?
Unisci gli amminoacidi con legami peptidici dall'N-terminale al C-terminale, perdendo una molecola d'acqua per ogni legame. Lo strumento MolDraw lo fa per te: scrivi DRVYIHPF o Asp-Arg-Val-Tyr-Ile-His-Pro-Phe e restituisce lo SMILES isomerico, un disegno, la formula e le masse.
Qual è la formula molecolare e la massa di GGG?
La triglicina (GGG) è C6H11N3O4. La sua massa monoisotopica è 189,0750 Da e la sua massa molare media è 189,17 g/mol.
Qual è la massa esatta dell'angiotensina II?
L'angiotensina II, DRVYIHPF, è C50H71N13O12. La massa monoisotopica è 1045,5345 Da, lo ione [M+H]+ si trova a m/z 1046,5418 e la massa media è 1046,18 g/mol.
Perché una sequenza di DNA si scrive da 5' a 3'?
Ogni nucleotide è collegato dall'ossigeno in 3' di uno zucchero al lato del carbonio in 5' del successivo tramite un fosfato. Il filamento ha quindi un'estremità 5' e un'estremità 3' e per convenzione si scrive partendo dall'estremità 5'.
Come calcolo la Tm di un primer?
Per meno di 14 nucleotidi usa la regola di Wallace, Tm = 2(A+T) + 4(G+C) in °C. Per 14 o più usa Tm = 64,9 + 41(G+C − 16,4)/N. Il primer forward M13 GTAAAACGACGGCCAGT (17 nt, 9 G o C) dà 47,1 °C.
Che cos'è il complementare inverso di una sequenza di DNA?
Sostituisci ogni base con la sua compagna (A con T, G con C) e poi inverti l'ordine, così il risultato si legge da 5' a 3'. Il complementare inverso di 5'-ATGC-3' è 5'-GCAT-3'. GAATTC, il sito di EcoRI, è il complementare inverso di sé stesso.
Quali valori di pKa si usano per il pI dei peptidi?
Il set EMBOSS: N-terminale 8,6, C-terminale 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8 e Arg 12,5. Altri set di pKa danno valori di pI che differiscono di qualche decimo di unità.
Un ponte disolfuro cambia la massa di un peptide?
Sì. Ogni legame S–S toglie due atomi di idrogeno, quindi la massa monoisotopica scende di 2,0157 Da. L'ossitocina, con il suo unico ponte disolfuro e l'ammide C-terminale, è C43H66N12O12S2, 1007,19 g/mol.