De la séquence à la structure : SMILES, formule et masse des peptides et de l'ADN, avec un outil gratuit
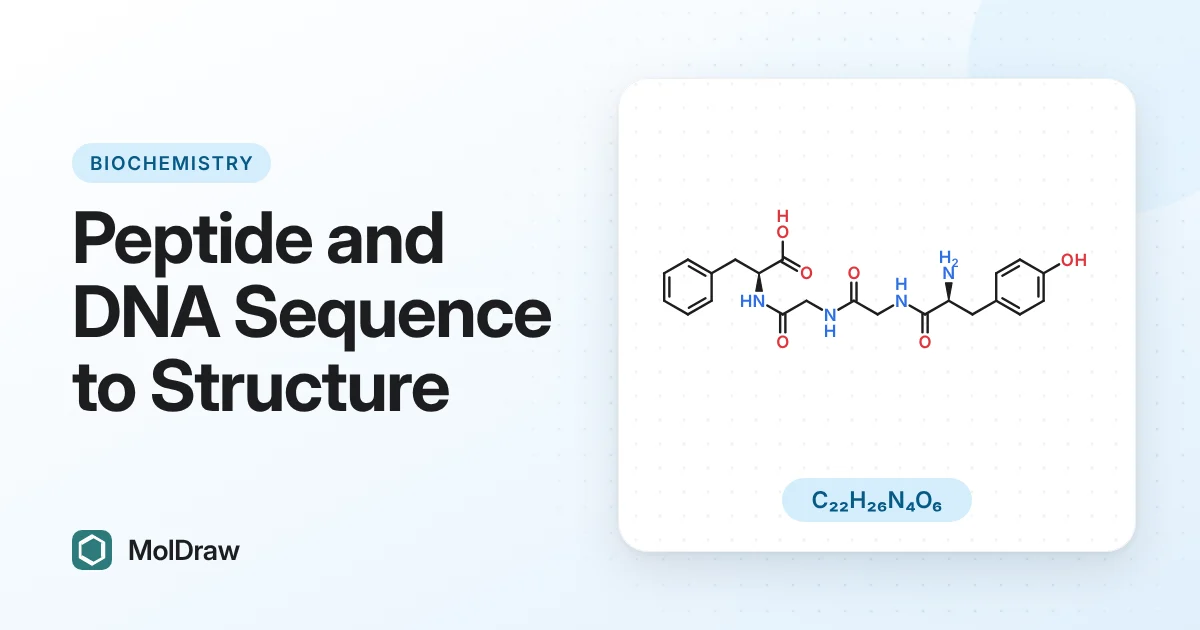
Réponse courte : la structure d'un peptide correspond à ses acides aminés reliés par des liaisons peptidiques, écrits de l'extrémité N-terminale à l'extrémité C-terminale. La structure d'un ADN ou d'un ARN correspond à ses nucléotides reliés par des liaisons phosphodiester 3′-5′, écrits de 5′ vers 3′. Collez une séquence dans l'outil séquence peptidique et ADN en structure pour obtenir le SMILES isomérique complet, un dessin, la formule et les masses. GGG a pour formule C6H11N3O4 (189,0750 Da), et 5′-ATGC-3′ a pour formule C39H50N15O22P3 (1173,82 g/mol).
Les termes clés en une ligne chacun
| Liaison peptidique | La liaison amide C(=O)–NH entre le carbone du carboxyle d'un acide aminé et l'azote du groupe amino du suivant. |
|---|---|
| Résidu | Un acide aminé au sein d'une chaîne : l'acide aminé libre moins une molécule de H2O. |
| Extrémité N-terminale, extrémité C-terminale | L'extrémité amino libre et l'extrémité carboxyle libre. Les séquences s'écrivent de N vers C. |
| Nucléotide | Une base sur le carbone 1′ d'un sucre, avec un phosphate. L'ADN utilise le 2-désoxyribose, l'ARN le ribose. |
| Liaison phosphodiester | La liaison O–P–O de l'oxygène 3′ d'un sucre à l'oxygène 5′ du suivant. |
| Masse monoisotopique | Masse calculée avec l'isotope le plus abondant de chaque élément. Correspond au premier pic en SM haute résolution. |
| Masse moyenne | Masse calculée avec les abondances isotopiques naturelles. Utilisez-la pour les pesées et la molarité. |
De la séquence peptidique à la structure
Chaque liaison peptidique libère une molécule d'eau. La formule d'un peptide linéaire est donc la somme des formules de ses résidus plus un H2O pour les deux extrémités libres.
Calcul détaillé, GGG : la glycine a pour formule C2H5NO2. Trois glycines donnent C6H15N3O6. Deux liaisons peptidiques retirent 2 H2O. Résultat : C6H11N3O4, 189,0750 Da en masse monoisotopique.
L'ordre compte. Asp-Phe (DF) a un NH2 libre sur l'acide aspartique, tandis que Phe-Asp (FD) l'a sur la phénylalanine. Ce sont des molécules différentes de même formule.
Chaque carbone alpha est L. Selon les règles CIP, cela correspond à S pour tous les résidus standard sauf la cystéine, qui est R car le soufre est prioritaire sur le groupe carboxyle. La glycine n'a pas de stéréocentre. L'isoleucine est (2S,3S) et la thréonine (2S,3R).
Les groupes terminaux modifient la formule :
- Acétyle N-terminal : + C2H2O, +42,0106 Da.
- Amide C-terminal : −OH devient −NH2, −0,9840 Da.
- Cyclique tête-à-queue : une liaison peptidique de plus, −H2O, −18,0106 Da.
- Pont disulfure : −2 H par liaison S–S, −2,0157 Da.
pI, charge et coefficient d'extinction
La charge nette d'un peptide est la somme sur tous les groupes ionisables. Un groupe basique apporte +1 / (1 + 10pH − pKa). Un groupe acide apporte −1 / (1 + 10pKa − pH). Le point isoélectrique (pI) est le pH auquel la charge nette est nulle.
L'outil utilise le jeu de pKa EMBOSS : extrémité N-terminale 8,6, extrémité C-terminale 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8, Arg 12,5. Pour GGG, les seuls groupes sont les deux extrémités, donc pI = (3,6 + 8,6) / 2 = 6,10.
Le coefficient d'extinction molaire à 280 nm provient de Trp, Tyr et des cystines : ε280 = 5500 × n(Trp) + 1490 × n(Tyr) + 125 × n(cystine) M−1 cm−1 (Pace et al., 1995). Un peptide sans Trp, Tyr ni Cys n'absorbe pas à 280 nm.
De la séquence d'ADN ou d'ARN à la structure
Chaque nucléotide porte une base sur le carbone 1′ du sucre : l'adénine et la guanine par N9, la cytosine, la thymine et l'uracile par N1. Tous les sucres sont β-D. Un phosphate relie l'oxygène 3′ d'un nucléotide à l'oxygène 5′ du suivant, donc chaque brin a une extrémité 5′ et une extrémité 3′.
Calcul détaillé, 5′-ATGC-3′ : les quatre désoxynucléosides sont dA C10H13N5O3, dT C10H14N2O5, dG C10H13N5O4 et dC C9H13N3O4, soit ensemble C39H53N15O16. Chacune des 3 liaisons phosphodiester ajoute H3PO4 et retire 2 H2O, soit un bilan net de PO2 moins un H. Résultat : C39H50N15O22P3, 1173,82 g/mol. Un 5′-phosphate ajoute HPO3 (+79,9663 Da).
L'ARN possède un 2′-OH sur chaque ribose, soit un oxygène de plus par nucléotide, et U au lieu de T.
- Teneur en GC : (G + C) / N × 100 %.
- Complément : A s'apparie avec T (U dans l'ARN), G avec C, lu de 3′ vers 5′.
- Complément inverse : le complément écrit de 5′ vers 3′.
- Tm, règle de Wallace (moins de 14 nt) : 2 × (A + T) + 4 × (G + C) °C.
- Tm, formule GC de base (14 nt ou plus) : 64,9 + 41 × (G + C − 16,4) / N °C.
Comment utiliser l'outil séquence en structure de MolDraw
- Ouvrez la page séquence peptidique et ADN en structure et choisissez Peptide ou DNA or RNA.
- Tapez ou collez la séquence. Les espaces, nombres, tirets et lignes d'en-tête FASTA sont ignorés. Input format détecte tout seul le code à une ou à trois lettres.
- Pour les peptides, cochez si besoin N-terminal acetyl (Ac-), C-terminal amide (-NH₂), Head-to-tail cyclic ou Disulfide bonds (Cys 1–2, 3–4…). Pour l'ADN ou l'ARN, cochez 5′-phosphate si l'extrémité 5′ est phosphorylée.
- Appuyez sur Build structure. Les résultats se mettent à jour pendant la saisie.
- Utilisez Copy SMILES, Download MOL, Download SDF ou Open in MolDraw editor. Jusqu'à 30 résidus ou nucléotides sont dessinés. Les séquences plus longues, jusqu'à 2000, donnent tout de même la formule, les masses et le SMILES.
Exemples résolus
Exemple 1 : l'angiotensine II pour la spectrométrie de masse
DRVYIHPF donne C50H71N13O12. Masse monoisotopique 1045,5345 Da, [M+H]+ 1046,5418, [M+2H]2+ 523,7745. pI 7,54, charge +0,22 à pH 7. Une Tyr donne ε280 = 1490 M−1 cm−1.
Exemple 2 : l'ocytocine avec un pont disulfure et un amide
Tapez CYIQNPCLG et cochez C-terminal amide et Disulfide bonds. Cys1 et Cys6 sont reliées, ce qui ferme un cycle à 20 chaînons. Résultat : C43H66N12O12S2, 1007,19 g/mol, masse monoisotopique 1006,4365 Da.
Exemple 3 : l'amorce de séquençage M13 forward
5′-GTAAAACGACGGCCAGT-3′ compte 17 nt dont 9 G ou C, donc GC = 52,9 %. Avec 14 nt ou plus, la formule GC de base s'applique : Tm = 64,9 + 41 × (9 − 16,4) / 17 = 47,1 °C. Le complément inverse est 5′-ACTGGCCGTCGTTTTAC-3′.
Exemple 4 : le site EcoRI
5′-GAATTC-3′ est son propre complément inverse, comme le sont généralement les sites de restriction. GC = 33,3 %, Tm de Wallace = 2 × 4 + 4 × 2 = 16 °C. Sous forme de simple brin à extrémités libres, il a pour formule C59H75N22O34P5, 1791,22 g/mol.
Tableau récapitulatif
| GGG | C6H11N3O4, 189,0750 Da, pI 6,10 |
|---|---|
| Asp-Phe (DF) | C13H16N2O5, 280,1059 Da, pI 3,75 |
| Angiotensine II | C50H71N13O12, 1045,5345 Da, pI 7,54 |
| Ocytocine | C43H66N12O12S2, 1007,19 g/mol |
| ADN ATGC | C39H50N15O22P3, 1173,82 g/mol, GC 50 %, Tm 12 °C |
| Amorce M13 directe | 17 nt, GC 52,9 %, Tm 47,1 °C |
Erreurs courantes
- Écrire un peptide à partir de la mauvaise extrémité. YGGFL est la Leu-enképhaline. LFGGY est un autre peptide.
- Ajouter une molécule d'eau par résidu. Une chaîne linéaire reçoit un seul H2O au total, pas un par résidu. Un peptide cyclique n'en reçoit aucun.
- Utiliser la masse moyenne pour les pics de SM. Les pics haute résolution correspondent à la masse monoisotopique.
- Oublier les ponts disulfure. Chaque liaison S–S vaut −2,016 Da.
- Confondre T et U. T est dans l'ADN, U dans l'ARN.
- Commander une amorce sous forme de simple complément. Les oligos sont synthétisés de 5′ vers 3′, il vous faut donc généralement le complément inverse.
- Utiliser la règle de Wallace pour de longues amorces. Elle surestime la Tm au-delà d'environ 14 nt.
Questions et réponses
Comment transformer une séquence peptidique en structure chimique ?
Reliez les acides aminés par des liaisons peptidiques de l'extrémité N-terminale à l'extrémité C-terminale, en perdant une molécule d'eau par liaison. L'outil MolDraw le fait pour vous : tapez DRVYIHPF ou Asp-Arg-Val-Tyr-Ile-His-Pro-Phe et il renvoie le SMILES isomérique, un dessin, la formule et les masses.
Quelles sont la formule brute et la masse de GGG ?
La triglycine (GGG) a pour formule C6H11N3O4. Sa masse monoisotopique est de 189,0750 Da et sa masse molaire moyenne de 189,17 g/mol.
Quelle est la masse exacte de l'angiotensine II ?
L'angiotensine II, DRVYIHPF, a pour formule C50H71N13O12. La masse monoisotopique est de 1045,5345 Da, l'ion [M+H]+ est à m/z 1046,5418 et la masse moyenne est de 1046,18 g/mol.
Pourquoi une séquence d'ADN s'écrit-elle de 5' vers 3' ?
Chaque nucléotide est relié par un phosphate de l'oxygène 3' d'un sucre au côté du carbone 5' du suivant. Le brin a donc une extrémité 5' et une extrémité 3', et par convention on l'écrit en partant de l'extrémité 5'.
Comment calculer la Tm d'une amorce ?
Pour moins de 14 nucléotides, utilisez la règle de Wallace, Tm = 2(A+T) + 4(G+C) en °C. Pour 14 ou plus, utilisez Tm = 64,9 + 41(G+C − 16,4)/N. L'amorce M13 forward GTAAAACGACGGCCAGT (17 nt, 9 G ou C) donne 47,1 °C.
Qu'est-ce que le complément inverse d'une séquence d'ADN ?
Remplacez chaque base par sa partenaire (A avec T, G avec C) puis inversez l'ordre pour que le résultat se lise de 5' vers 3'. Le complément inverse de 5'-ATGC-3' est 5'-GCAT-3'. GAATTC, le site EcoRI, est son propre complément inverse.
Quelles valeurs de pKa sont utilisées pour le pI d'un peptide ?
Le jeu EMBOSS : extrémité N-terminale 8,6, extrémité C-terminale 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8 et Arg 12,5. D'autres jeux de pKa donnent des pI qui diffèrent de quelques dixièmes d'unité.
Un pont disulfure modifie-t-il la masse d'un peptide ?
Oui. Chaque liaison S–S retire deux atomes d'hydrogène, donc la masse monoisotopique diminue de 2,0157 Da. L'ocytocine, avec son pont disulfure et son amide C-terminal, a pour formule C43H66N12O12S2, 1007,19 g/mol.