Von der Sequenz zur Struktur: SMILES, Summenformel und Masse von Peptiden und DNA, mit kostenlosem Tool
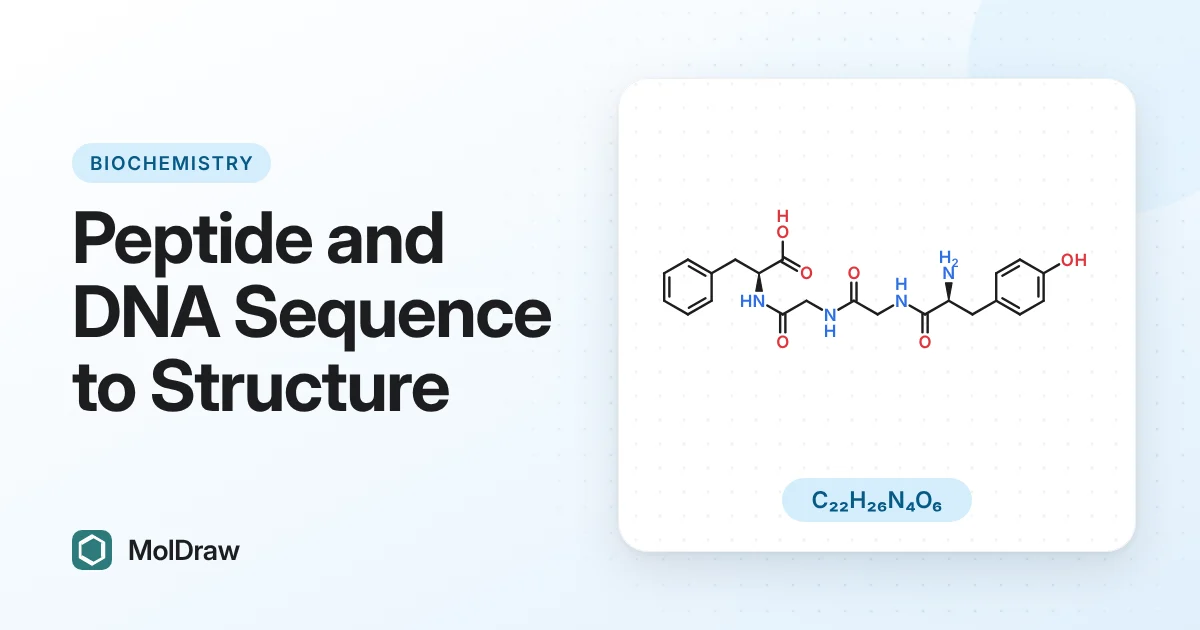
Kurz gesagt: Eine Peptidstruktur besteht aus Aminosäuren, die über Peptidbindungen verknüpft sind, geschrieben vom N- zum C-Terminus. Eine DNA- oder RNA-Struktur besteht aus Nukleotiden, die über 3′-5′-Phosphodiesterbindungen verknüpft sind, geschrieben von 5′ nach 3′. Füge eine Sequenz in das Tool Peptid- und DNA-Sequenz in Struktur ein und erhalte den vollständigen isomeren SMILES, eine Zeichnung, die Summenformel und die Massen. GGG ist C6H11N3O4 (189,0750 Da), und 5′-ATGC-3′ ist C39H50N15O22P3 (1173,82 g/mol).
Die wichtigsten Begriffe in je einer Zeile
| Peptidbindung | Die Amidverknüpfung C(=O)–NH zwischen dem Carboxyl-Kohlenstoff einer Aminosäure und dem Amino-Stickstoff der nächsten. |
|---|---|
| Rest | Eine Aminosäure innerhalb einer Kette: die freie Aminosäure minus ein H2O. |
| N-Terminus, C-Terminus | Das freie Amino-Ende und das freie Carboxyl-Ende. Sequenzen werden von N nach C geschrieben. |
| Nukleotid | Eine Base am Kohlenstoff 1′ eines Zuckers, mit einem Phosphat. DNA verwendet 2-Desoxyribose, RNA Ribose. |
| Phosphodiesterbindung | Die O–P–O-Verknüpfung vom 3′-Sauerstoff eines Zuckers zum 5′-Sauerstoff des nächsten. |
| Monoisotopische Masse | Masse mit dem häufigsten Isotop jedes Elements. Entspricht dem ersten Peak in der hochauflösenden MS. |
| Mittlere Masse | Masse mit natürlichen Isotopenhäufigkeiten. Verwende sie zum Einwiegen und für die Molarität. |
Von der Peptidsequenz zur Struktur
Jede Peptidbindung setzt ein Wasser frei. Die Summenformel eines linearen Peptids ist daher die Summe der Restformeln plus ein H2O für die beiden freien Enden.
Durchgerechnet, GGG: Glycin ist C2H5NO2. Drei Glycine ergeben C6H15N3O6. Zwei Peptidbindungen entfernen 2 H2O. Ergebnis: C6H11N3O4, monoisotopisch 189,0750 Da.
Die Reihenfolge ist wichtig. Asp-Phe (DF) hat eine freie NH2-Gruppe an der Asparaginsäure, Phe-Asp (FD) dagegen am Phenylalanin. Es sind verschiedene Moleküle mit derselben Summenformel.
Jedes α-Kohlenstoffatom ist L-konfiguriert. Nach den CIP-Regeln ist das bei allen Standardresten S, außer bei Cystein, das R ist, weil Schwefel Vorrang vor der Carboxylgruppe hat. Glycin hat kein Stereozentrum. Isoleucin ist (2S,3S), Threonin (2S,3R).
Endgruppen ändern die Summenformel:
- N-terminales Acetyl: + C2H2O, +42,0106 Da.
- C-terminales Amid: −OH wird zu −NH2, −0,9840 Da.
- Kopf-Schwanz-cyclisch: eine Peptidbindung mehr, −H2O, −18,0106 Da.
- Disulfidbrücke: −2 H pro S–S-Bindung, −2,0157 Da.
pI, Ladung und Extinktionskoeffizient
Die Nettoladung eines Peptids ist die Summe über alle ionisierbaren Gruppen. Eine basische Gruppe trägt +1 / (1 + 10pH − pKa) bei, eine saure Gruppe −1 / (1 + 10pKa − pH). Der isoelektrische Punkt (pI) ist der pH-Wert, bei dem die Nettoladung null ist.
Das Tool verwendet den EMBOSS-pKs-Satz: N-Terminus 8,6, C-Terminus 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8, Arg 12,5. Bei GGG sind die einzigen Gruppen die beiden Enden, daher gilt pI = (3,6 + 8,6) / 2 = 6,10.
Der molare Extinktionskoeffizient bei 280 nm stammt von Trp, Tyr und Cystinen: ε280 = 5500 × n(Trp) + 1490 × n(Tyr) + 125 × n(Cystin) M−1 cm−1 (Pace et al., 1995). Ein Peptid ohne Trp, Tyr oder Cys absorbiert nicht bei 280 nm.
Von der DNA- oder RNA-Sequenz zur Struktur
Jedes Nukleotid trägt eine Base am Kohlenstoff 1′ des Zuckers: Adenin und Guanin über N9, Cytosin, Thymin und Uracil über N1. Alle Zucker sind β-D. Ein Phosphat verbindet den 3′-Sauerstoff eines Nukleotids mit dem 5′-Sauerstoff des nächsten, daher hat jeder Strang ein 5′- und ein 3′-Ende.
Durchgerechnet, 5′-ATGC-3′: Die vier Desoxynukleoside sind dA C10H13N5O3, dT C10H14N2O5, dG C10H13N5O4 und dC C9H13N3O4, zusammen C39H53N15O16. Jede der 3 Phosphodiesterbindungen fügt H3PO4 hinzu und entfernt 2 H2O, netto PO2 minus ein H. Ergebnis: C39H50N15O22P3, 1173,82 g/mol. Ein 5′-Phosphat fügt HPO3 hinzu (+79,9663 Da).
RNA hat an jeder Ribose eine 2′-OH-Gruppe, also ein Sauerstoffatom mehr pro Nukleotid, und U statt T.
- GC-Gehalt: (G + C) / N × 100 %.
- Komplement: A paart mit T (in RNA mit U), G mit C, gelesen von 3′ nach 5′.
- Reverses Komplement: das Komplement, geschrieben von 5′ nach 3′.
- Tm, Wallace-Regel (unter 14 nt): 2 × (A + T) + 4 × (G + C) °C.
- Tm, einfache GC-Formel (ab 14 nt): 64,9 + 41 × (G + C − 16,4) / N °C.
So nutzt du das MolDraw-Tool „Sequenz in Struktur“
- Öffne die Seite Peptid- und DNA-Sequenz in Struktur und wähle Peptid oder DNA oder RNA.
- Gib die Sequenz ein oder füge sie ein. Leerzeichen, Zahlen, Bindestriche und FASTA-Kopfzeilen werden ignoriert. Eingabeformat erkennt Ein- oder Dreibuchstabencode selbstständig.
- Setze bei Peptiden nach Bedarf Häkchen bei N-terminales Acetyl (Ac-), C-terminales Amid (-NH₂), Kopf-Schwanz-cyclisch oder Disulfidbrücken (Cys 1–2, 3–4 …). Bei DNA oder RNA setzt du ein Häkchen bei 5′-Phosphat, wenn das 5′-Ende phosphoryliert ist.
- Klicke auf Struktur erstellen. Die Ergebnisse aktualisieren sich beim Tippen.
- Nutze SMILES kopieren, MOL herunterladen, SDF herunterladen oder Im MolDraw-Editor öffnen. Bis zu 30 Reste oder Nukleotide werden gezeichnet. Längere Sequenzen bis 2000 liefern weiterhin Summenformel, Massen und SMILES.
Rechenbeispiele
Beispiel 1: Angiotensin II für die Massenspektrometrie
DRVYIHPF ergibt C50H71N13O12. Monoisotopische Masse 1045,5345 Da, [M+H]+ 1046,5418, [M+2H]2+ 523,7745. pI 7,54, Ladung +0,22 bei pH 7. Ein Tyr ergibt ε280 = 1490 M−1 cm−1.
Beispiel 2: Oxytocin mit Disulfidbrücke und Amid
Gib CYIQNPCLG ein und setze Häkchen bei C-terminales Amid und Disulfidbrücken. Cys1 und Cys6 werden verbunden und schließen einen 20-gliedrigen Ring. Ergebnis: C43H66N12O12S2, 1007,19 g/mol, monoisotopisch 1006,4365 Da.
Beispiel 3: der M13-Forward-Sequenzierprimer
5′-GTAAAACGACGGCCAGT-3′ hat 17 nt mit 9 G oder C, also GC = 52,9 %. Ab 14 nt gilt die einfache GC-Formel: Tm = 64,9 + 41 × (9 − 16,4) / 17 = 47,1 °C. Das reverse Komplement ist 5′-ACTGGCCGTCGTTTTAC-3′.
Beispiel 4: die EcoRI-Schnittstelle
5′-GAATTC-3′ ist ihr eigenes reverses Komplement, wie es bei Restriktionsschnittstellen meist der Fall ist. GC = 33,3 %, Wallace-Tm = 2 × 4 + 4 × 2 = 16 °C. Als Einzelstrang mit freien Enden ist sie C59H75N22O34P5, 1791,22 g/mol.
Übersichtstabelle
| GGG | C6H11N3O4, 189,0750 Da, pI 6,10 |
|---|---|
| Asp-Phe (DF) | C13H16N2O5, 280,1059 Da, pI 3,75 |
| Angiotensin II | C50H71N13O12, 1045,5345 Da, pI 7,54 |
| Oxytocin | C43H66N12O12S2, 1007,19 g/mol |
| DNA ATGC | C39H50N15O22P3, 1173,82 g/mol, GC 50 %, Tm 12 °C |
| M13-Forward-Primer | 17 nt, GC 52,9 %, Tm 47,1 °C |
Häufige Fehler
- Ein Peptid vom falschen Ende her schreiben. YGGFL ist Leu-Enkephalin. LFGGY ist ein anderes Peptid.
- Pro Rest ein Wasser addieren. Eine lineare Kette bekommt insgesamt ein H2O, nicht eines pro Rest. Ein cyclisches Peptid bekommt keines.
- Mittlere Masse für MS-Peaks verwenden. Hochaufgelöste Peaks entsprechen der monoisotopischen Masse.
- Disulfidbrücken vergessen. Jede S–S-Bindung zählt −2,016 Da.
- T und U verwechseln. T steht für DNA, U für RNA.
- Einen Primer als einfaches Komplement bestellen. Oligos werden von 5′ nach 3′ synthetisiert, daher brauchst du meist das reverse Komplement.
- Die Wallace-Regel für lange Primer verwenden. Sie überschätzt Tm ab etwa 14 nt.
Fragen und Antworten
Wie wandle ich eine Peptidsequenz in eine chemische Struktur um?
Verknüpfe die Aminosäuren vom N-Terminus zum C-Terminus über Peptidbindungen, wobei pro Bindung ein Wasser abgespalten wird. Das MolDraw-Tool erledigt das für dich: Gib DRVYIHPF oder Asp-Arg-Val-Tyr-Ile-His-Pro-Phe ein, und du erhältst den isomeren SMILES, eine Zeichnung, die Summenformel und die Massen.
Wie lauten Summenformel und Masse von GGG?
Triglycin (GGG) ist C6H11N3O4. Seine monoisotopische Masse beträgt 189,0750 Da, seine mittlere molare Masse 189,17 g/mol.
Wie groß ist die exakte Masse von Angiotensin II?
Angiotensin II, DRVYIHPF, ist C50H71N13O12. Die monoisotopische Masse beträgt 1045,5345 Da, das [M+H]+-Ion liegt bei m/z 1046,5418, und die mittlere Masse beträgt 1046,18 g/mol.
Warum wird eine DNA-Sequenz von 5' nach 3' geschrieben?
Jedes Nukleotid ist über ein Phosphat vom 3'-Sauerstoff eines Zuckers mit der 5'-Kohlenstoffseite des nächsten verbunden. Der Strang hat daher ein 5'-Ende und ein 3'-Ende, und per Konvention schreibt man ihn ab dem 5'-Ende.
Wie berechne ich den Tm-Wert eines Primers?
Für weniger als 14 Nukleotide gilt die Wallace-Regel, Tm = 2(A+T) + 4(G+C) in °C. Für 14 oder mehr gilt Tm = 64,9 + 41(G+C − 16,4)/N. Der M13-Forward-Primer GTAAAACGACGGCCAGT (17 nt, 9 G oder C) ergibt 47,1 °C.
Was ist das reverse Komplement einer DNA-Sequenz?
Tausche jede Base gegen ihren Partner (A mit T, G mit C) und kehre dann die Reihenfolge um, sodass das Ergebnis von 5' nach 3' gelesen wird. Das reverse Komplement von 5'-ATGC-3' ist 5'-GCAT-3'. GAATTC, die EcoRI-Schnittstelle, ist ihr eigenes reverses Komplement.
Welche pKs-Werte werden für den pI eines Peptids verwendet?
Der EMBOSS-Satz: N-Terminus 8,6, C-Terminus 3,6, Asp 3,9, Glu 4,1, His 6,5, Cys 8,5, Tyr 10,1, Lys 10,8 und Arg 12,5. Andere pKs-Sätze liefern pI-Werte, die um einige Zehntel abweichen.
Ändert eine Disulfidbrücke die Masse eines Peptids?
Ja. Jede S–S-Bindung entfernt zwei Wasserstoffatome, die monoisotopische Masse sinkt also um 2,0157 Da. Oxytocin mit seiner einen Disulfidbrücke und dem C-terminalen Amid ist C43H66N12O12S2, 1007,19 g/mol.